


Le premesse
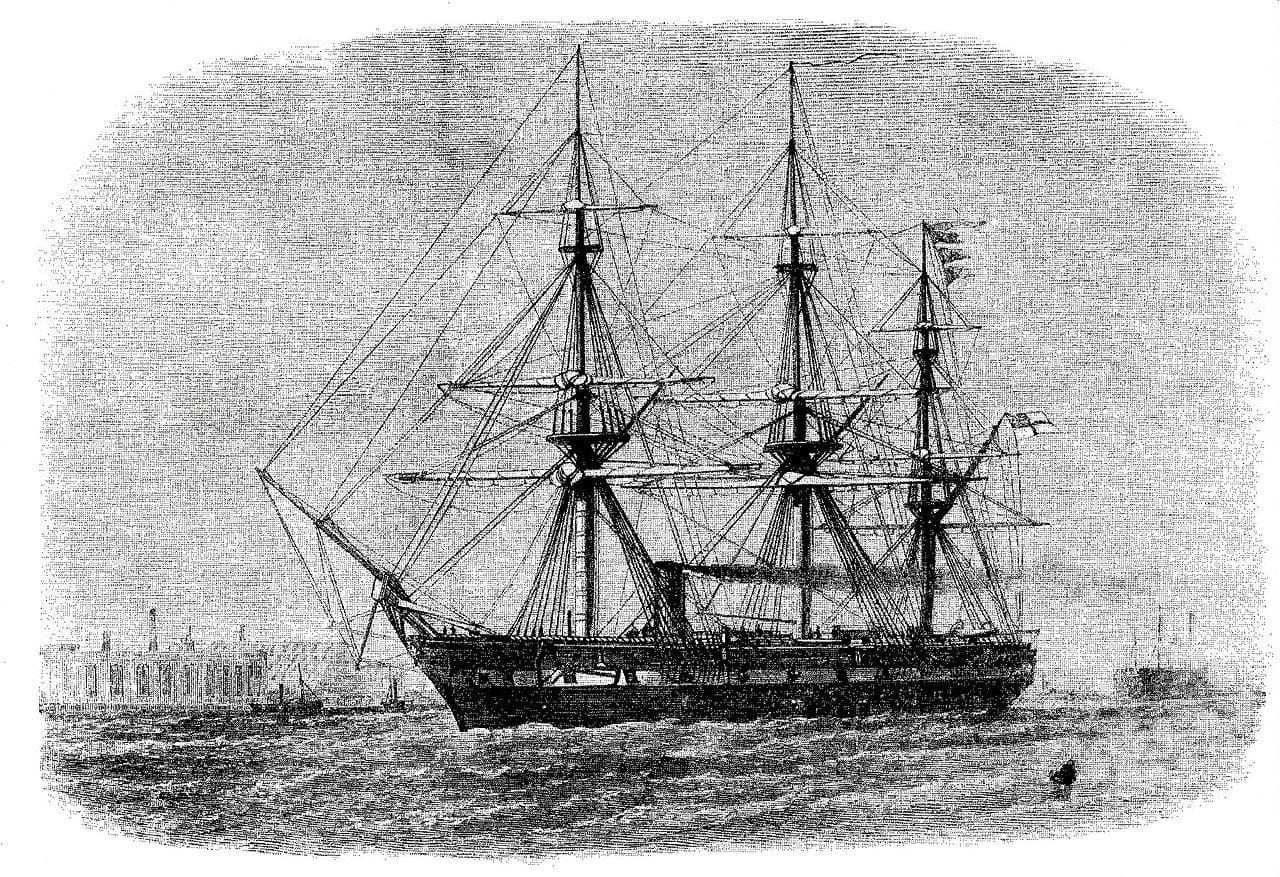
Per secoli si è creduto che la vita marina esistesse soltanto dove arrivavano i raggi del Sole. Nel 1841, durante le campagne a bordo della HMS Beacon, il naturalista Edward Forbes formulò la cosiddetta teoria azoica (“zona senza vita”): secondo lui, oltre i 500 metri di profondità, il buio avrebbe impedito la fotosintesi e quindi ogni possibilità di vita. Questa convinzione cominciò a vacillare quando reti e draghe riportarono in superficie organismi raccolti per caso da grandi profondità. La svolta arrivò con la spedizione della HMS Challenger (1872–1876), che dimostrò in modo definitivo come gli abissi fossero tutt’altro che deserti: ricchi ecosistemi, popolati da creature nuove e sorprendenti. -Allegato 1 – Cronologia essenziale (premesse storiche).
La visione attuale
Oggi sappiamo che la colonna d’acqua è divisa in tre grandi zone. La prima, quella eufotica (0–200 m), è illuminata e brulicante di vita: qui il fitoplancton sfrutta la luce per produrre ossigeno e sostanza organica. La seconda, detta disfotica (200–1000 m), riceve solo bagliori deboli, troppo fiacchi per la fotosintesi. Più sotto si apre la fascia afotica (oltre 1000 m), regno del buio eterno.
Questi confini non sono rigidi: cambiano con le stagioni, la torbidità e la latitudine. Il rosso scompare quasi subito, il blu penetra più in profondità. Al di sotto della zona illuminata, la vita sopravvive grazie a ciò che cade dall’alto: la cosiddetta “neve marina”, una pioggia lenta di minuscoli fiocchi di detrito, alghe morte, escrementi di zooplancton, batteri e mucillagini che scendono verso il fondo.
Durante il viaggio parte di questo nutrimento viene consumata dai microbi, ma ciò che resta continua a cadere, portando energia sempre più giù. Oltre a questo movimento verticale, correnti e vortici trasportano lateralmente materia e nutrienti, ridistribuendo la vita nel mare profondo. In alcune zone intermedie si formano perfino regioni quasi prive di ossigeno (OMZ, Oxygen Minimum Zones), dove sopravvivono soltanto specie che si sono adattate a condizioni estreme.
In questo complesso equilibrio di luce, gravità, correnti e decompositori, prende forma la grande pompa biologica che collega la superficie con gli abissi. -Allegato 2 – Zone verticali dell’oceano (definizioni operative).
Alle grandi profondità
Come abbiamo già detto, sotto i 200 metri tutto cambia. Nel mesopelagico (200–1000 m), pesci lanterna e pesci ascia pattugliano il buio crepuscolare, insieme a sifonofori trasparenti, salpe e meduse a pettine. Molte specie compiono ogni giorno la più grande migrazione del pianeta: risalgono di notte verso la superficie e ridiscendono di giorno, formando il cosiddetto strato diffusore profondo (DSL), un “falso fondale” che si muove con il Sole.
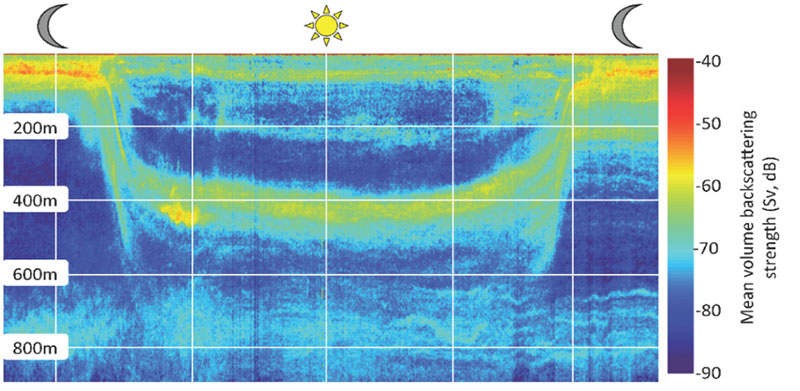
Nel batipelagico (1000–4000 m) regnano silenzio, buio e pressioni schiaccianti. Qui vivono predatori lenti e strani, spesso bioluminescenti: draghi delle profondità, pesci abissali con dentature a trappola, organismi che compensano la scarsità di cibo con sensi affinati e corpi adattati a consumare pochissima energia.
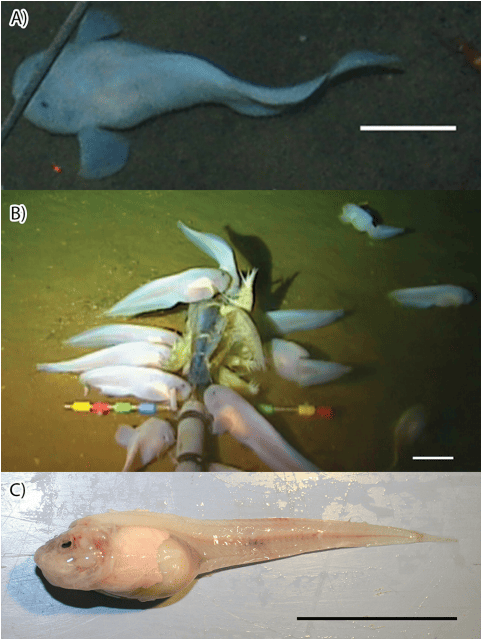
Più sotto ancora, nell’abisso (4000–6000 m) e nella fascia hadale (fino a 11.000 m), incontriamo creature quasi aliene: cetrioli di mare trasparenti, anfipodi agili, pesci lumaca capaci di vivere dove la pressione è centinaia di volte quella atmosferica.
Negli ultimi metri sopra il fondale, nello strato di confine bentico (BBL), la vita della colonna d’acqua si intreccia con quella del fondo: correnti lente sollevano sedimenti, mescolando nutrienti, resti organici e organismi mobili in un’unica rete vitale. -Allegato 3 – Migrazioni verticali, DSL e BBL (sintesi).
Ecosistemi senza sole ed esseri estremi
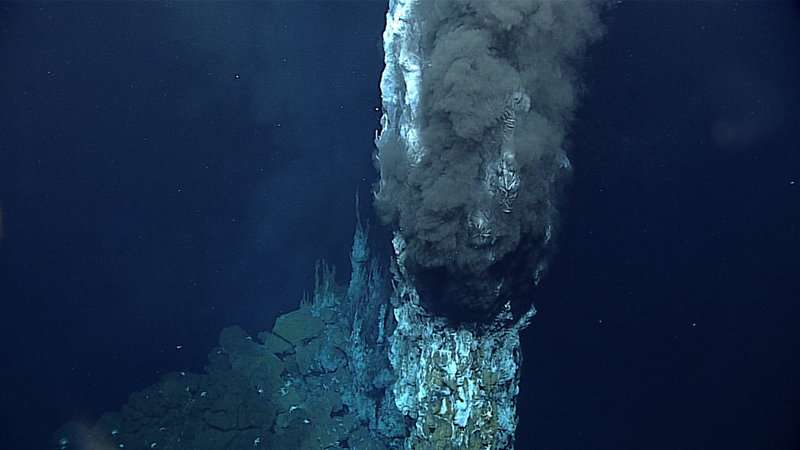
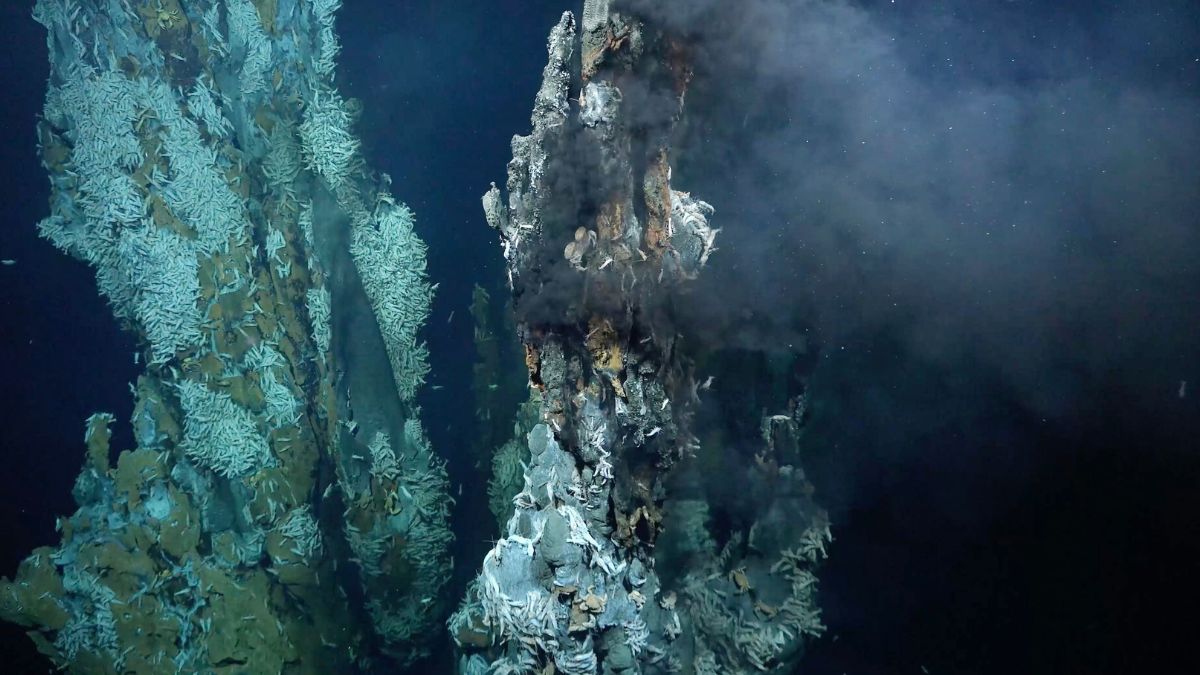
Non tutta la vita del profondo dipende dalla lenta pioggia della neve marina. Esistono luoghi speciali in cui il mare si illumina di un’altra energia, nascosta nelle viscere della Terra. Lungo le dorsali medio-oceaniche, le sorgenti idrotermali riversano fluidi caldi e ricchi di minerali: veri geyser sottomarini che trasformano l’oscurità in un laboratorio di vita.
Qui batteri e archei sfruttano composti come idrogeno solforato e ferro ridotto per produrre nutrimento. Attorno a loro fioriscono comunità brulicanti: vermi tubicoli giganti (Riftia), bivalvi gonfi di simbionti, crostacei che si aggirano fra colonne di fumo nero.
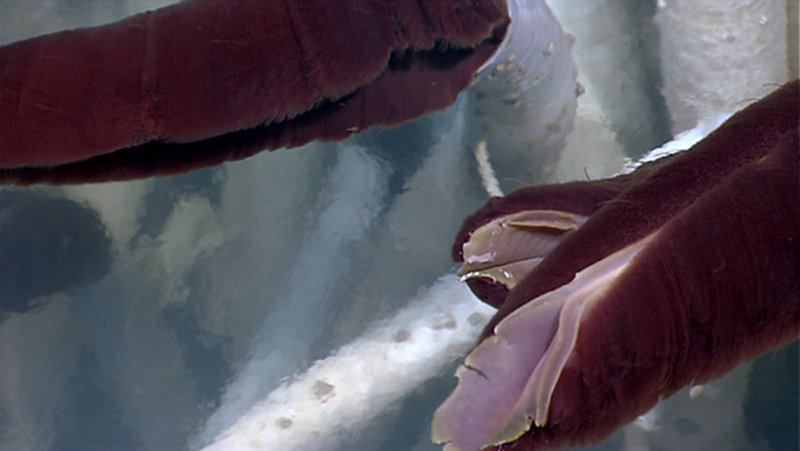
In altri punti del pianeta, sui margini continentali o in bacini sedimentari, si trovano le sorgenti fredde ricche di idrocarburi, zone di fuoriuscita di metano e idrocarburi. Qui letti di bivalvi e colonie di crostacei sopravvivono grazie a batteri simbionti capaci di trasformare energia chimica in vita.
In entrambi i casi, il Sole non serve: bastano gradienti chimici per costruire interi ecosistemi, modelli naturali che ci aiutano a immaginare la vita anche su mondi lontani, dove regnano il buio e il ghiaccio. -Allegato 4 – Ecosistemi chemosintetici (sorgenti idrotermali e sorgenti fredde). Ma l’ingegno della natura non finisce qui. Nel buio più totale prosperano miriadi di batteri estremofili, invisibili eppure straordinari.
Alcuni tollerano pressioni immense, altri crescono in acque gelide. La Shewanella violacea, per esempio, vive senza problemi a 8 °C e sotto oltre 500 atmosfere. Nei pressi dei camini idrotermali, i vermi Alvinella si rivestono di veri tappeti batterici che li proteggono dal calore e li nutrono. Sulle rocce si formano matte microbiche, strati viventi intrisi di sostanze polimeriche che collegano i cicli dello zolfo e del metano in una trama invisibile ma vitale. -Allegato 5 – Vincoli fisici e adattamenti.
Ripartizioni della biomassa
La maggior parte della vita oceanica si concentra nei primi 200 metri, nella fascia eufotica, che da sola ospita circa l’80–90% della biomassa globale. Ma sotto questa zona illuminata il quadro cambia: la biomassa residua — pari al 10–20% del totale oceanico — si distribuisce tra tre comparti principali.
La parte più abbondante — circa il 60–70% — è quella pelagica profonda, formata da organismi che vivono sospesi nell’acqua, lontani dal fondale. Un altro 20–30% è bentonica, cioè legata direttamente al fondo e ai sedimenti. Infine, nello strato di confine bentico (BBL) — i pochi metri immediatamente sopra il fondale, dove l’acqua e il sedimento interagiscono — si concentra il restante 5–15% della biomassa.
Queste proporzioni variano a seconda dell’ambiente: negli oceani poveri di nutrienti domina la vita pelagica, mentre vicino alle coste ricche di produttività o in prossimità di sorgenti idrotermali la componente bentonica può crescere fino a raddoppiare. -Allegato 6 – Ripartizioni indicative della biomassa.
Gli esseri bentonici
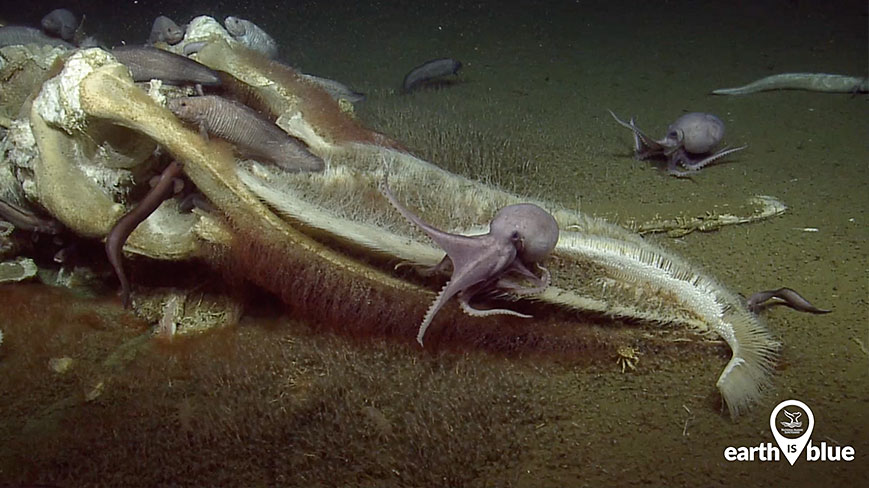
Il fondo marino, apparentemente uniforme, è in realtà un mosaico: sabbie, fanghi, rocce, colate detritiche. Qui vivono organismi che crescono lentamente e possono vivere a lungo. Alcuni fondali sono arricchiti dalla chemosintesi delle sorgenti idrotermali e delle sorgenti fredde ricche di idrocarburi. E il fondo non è mai statico: gli organismi lo rimescolano continuamente, ossigenandolo e integrandolo con la colonna d’acqua. Uno degli spettacoli più straordinari si ha con i whale fall: quando una balena muore e affonda, il suo corpo diventa per anni un’oasi di vita. Prima arrivano squali e necrofagi, poi colonie di vermi e crostacei, infine batteri che liberano solfuri dalle ossa, alimentando nuove comunità chemosintetiche. Un solo scheletro può trasformare il deserto abissale in un giardino temporaneo. -Allegato 7 – Dieta bentonica per profondità.
Idrotermalismo come culla della vita
Se le sorgenti idrotermali oggi sostengono comunità rigogliose, non è difficile immaginare che in passato abbiano offerto anche il palcoscenico per la nascita della vita stessa. Molti scienziati pensano che la vita possa essere nata proprio vicino a un camino idrotermale. Qui minerali e fluidi caldissimi avrebbero offerto le condizioni per la formazione delle prime molecole organiche. Nei campi alcalini come Lost City, le rocce trasformano l’acqua in fluidi ricchi di idrogeno, capaci di generare microcompartimenti naturali dove si accumulano energia e materia.
Questi scenari ricordano da vicino i processi che potrebbero avvenire negli oceani nascosti di lune come Europa o Encelado. Missioni spaziali future cercheranno proprio in quei pennacchi indizi chimici di vita primitiva.
La vita aliena sulla Terra
La Terra stessa ospita forme di vita che sembrano “aliene”. A chilometri sotto terra, batteri vivono senza luce, alimentandosi dell’energia liberata dalle rocce o dalla radioattività naturale. In Sudafrica, a 2,8 km di profondità, il microbo Desulforudis audaxviator sopravvive in totale isolamento. Nelle grotte e nei sedimenti oceanici sono stati trovati altri organismi capaci di resistere a calore, pressione e scarsità per tempi quasi eterni. Questa “biosfera nascosta” potrebbe contenere decine di miliardi di tonnellate di carbonio vivente. Se la vita riesce a prosperare così in profondità e in condizioni estreme, diventa ancora più plausibile immaginarla anche altrove, sotto i ghiacci di Marte o nelle croste di mondi oceanici.
Conclusioni
Il mare profondo è l’emblema della sopravvivenza con poco: un’economia basata sulla scarsità, che riesce comunque a creare reti complesse di vita. In superficie domina la luce, in profondità la gravità porta giù nutrimento, e localmente la geochimica sostituisce il Sole con la chemosintesi. Dalle migrazioni notturne del mesopelagico alle comunità dei camini idrotermali, dagli organismi che rimescolano i sedimenti alle oasi temporanee dei whale fall, emerge un’unica regola: dove c’è un gradiente di energia, lì può nascere la vita.
E guardando agli abissi, scopriamo non solo “quanto è profondo il mare”, ma quanto è profonda la vita stessa.
ALLEGATI
Allegato 1 – Cronologia essenziale (premesse storiche)
| Anno | Evento |
| 1841 | Osservazioni di Forbes (HMS Beacon) – azoic theory |
| 1872-1876 | Spedizione HMS Challenger – fauna abissale documentata |
| 1977 | Scoperta delle comunità delle sorgenti idrotermali |
| 1990-oggi | Sorgenti fredde ricche di idrocarburi, DSL, biosfera profonda; ROV (Remotely Operated Vehicle, veicolo filoguidato)/AUV (Autonomous Underwater Vehicle, veicolo autonomo) operativi |
Allegato 2 – Zone verticali dell’oceano (definizioni operative)
| Zona | Profondità tipica | Luce | Produzione primaria | Note |
| Eufotica | 0-200 m | Presente | Alta | Varia con torbidità /latitudine |
| Disfotica | ~200-1000 m | Debole | Trascurabile | Migrazioni verticali frequenti |
| Afotica | >~1000 m | Assente | Nulla | Dominio abissale e hadale |
Allegato 3 – Migrazioni verticali, DSL e BBL (sintesi)
| Elemento | Cos’è | Effetto ecologico | Nota |
| DVM (Diel Vertical Migration, migrazione verticale giornaliera) | Risalita notturna, discesa diurna | Trasferimento di carbonio verso il profondo | Varia con luce/latitudine |
| DSL (Deep Scattering Layer, strato diffusore profondo) | Strato che riflette il sonar | “Falso fondo” acustico, rifugio/prede | Profondità mobile giorno/notte |
| BBL (Benthic Boundary Layer, strato di confine bentico) | Ultimi metri sopra il fondo | Scambi pelagico/bentico, risospensione | Cruciale per foraggiamento |
Allegato 4 – Ecosistemi chemosintetici (sorgenti idrotermali e sorgenti fredde ricche di idrocarburi)
| Ambiente | Fonte di energia | Produttori primari | Consumatori dominanti |
| Camini idrotermali | H2S, H2, Fe2+ | Batteri/Archei chemioautotrofi tiotrofici | Riftia, Bathymodiolus, crostacei |
| Sorgenti fredde ricche di idrocarburi | Metano, solfuri | Batteri/Archei metanotrofi e tiotrofici | Bivalvi simbiontici, crostacei bentici |
Allegato 5 – Vincoli fisici e adattamenti
| Fattore | Gradiente | Effetto | Risposta biologica |
| Pressione | +1 atm/10 m | Instabilità proteica | Piezotolleranza; osmoli (TMAO) |
| Temperatura | ~2-4°C in profondità | Metabolismo rallentato | Lipidi insaturi; enzimi adattati |
| Luce | ~0 | Fine fotosintesi | Bioluminescenza; sensi alternativi |
| Nutrienti | Decrescenti con profondità | Scarsità cronica | Crescita lenta; opportunismo |
Allegato 6 – Ripartizioni indicative della biomassa
| Compartimento (profonditá tipica) | Che cos’é | Quota media globale (sull’intera biomassa oceanica) | Variazioni possibili | Da cosa dipende |
| Eufotico (0-200 m) | Zona illuminata dal Sole, dove il fitoplancton produce ossigeno e nutrimento; ospita la gran parte della vita marina visibile (pesci, plancton, mammiferi marini) | ~80-90% della biomassa oceanica totale (e ~90% della produzione primaria globale) | Biomassa ridotta in mari polari o acque torbide | Intensità della luce, stagioni, nutrienti superficiali |
| Pelagico profondo (200 m fino al fondo, escluso il contatto col sedimento) | Organismi sospesi nella colonna d’acqua, che non toccano mai il fondale (pesci abissali, crostacei, sifonofori) | ~8-12% della biomassa oceanica totale (equivale al 60-70% della sola biomassa profonda) | Può salire fino a 80% della biomassa profonda in oceani oligotrofici | Produttività superficiale e circolazione delle acque |
| BBL – Benthic Boundary Layer (ultimi 1-10 m sopra il fondale) | Fascia d’acqua immediatamente sopra il fondo, dove correnti e risospensioni mescolano sedimenti e nutrienti | ~1-2% della biomassa oceanica totale (5-15% della biomassa profonda) | Fino a 20% della biomassa profonda vicino a sorgenti idrotermali o sorgenti fredde ricche di idrocarburi | Correnti di fondo e turbolenza |
| Bentico (su fondale e sedimenti, da 200 m a >10.000 m) | Organismi che vivono sul fondale (stelle marine, oloturie, ricci) o dentro i sedimenti (vermi, crostacei, molluschi) | ~2-5% della biomassa oceanica totale (20-30% della biomassa profonda) | Può crescere fino a 40% della biomassa profonda in coste produttive o sorgenti attive | Apporto di detrito organico e morfologia del substrato |
Allegato 7 – Dieta bentonica per profondità
| Profondità | Fonte primaria | Esempi di dieta |
| 0-200 m | Fitoplancton, macroalghe, detriti freschi | Ricci: alghe; polpi: crostacei; predatori: animali |
| 200-1.000 m | Neve marina, carcasse parziali | Gamberi: particelle; pesci: piccoli animali, resti |
| 1.000-4.000 m | Neve marina, “whale falls” | Isopodi: carogne; cetrioli: detriti |
| 4.000-6.000 m | Detriti degradati, chemosintesi (unica produzione primaria) | Tubicoli: simbiosi batterica |
| 6.000-11.000 m | Detriti rari, batteri estremofili | Anfipodi: organico disponibile |
Bibliografia
- Forbes, E. (1844). Report on the Mollusca and Radiata of the Aegean Sea, and on their distribution, considered as bearing on geology. Reports of the British Association for the Advancement of Science, 1843, 129–193. London: John Murray.
- Thomson, C. Wyville (1878). The Voyage of the “Challenger” – The Atlantic. Harper & Brothers.
- Gage, J.D., & Tyler, P.A. (1991). Deep-Sea Biology: A Natural History of Organisms at the Deep-Sea Floor. Cambridge Univ. Press.
- Ramirez-Llodra, E., et al. (2010). Deep, diverse and definitely different. Biogeosciences, 7(9), 2851–2899. https://doi.org/10.5194/bg-7-2851-2010
- Van Dover, C. L. (2000). The Ecology of Deep-Sea Hydrothermal Vents. Princeton University Press.
- Levin, L.A., et al. (2016). Hydrothermal vents and methane seeps. Frontiers in Marine Science, 3, 72. https://doi.org/10.3389/fmars.2016.00072
- Bartlett, D.H. (2002). Pressure effects on microbial processes. BBA – Protein Structure and Molecular Enzymology, 1595, 367–381. https://doi.org/10.1016/S0167-4838(01)00356-1
- Jørgensen, B.B., & Boetius, A. (2007). Feast and famine… Nature Reviews Microbiology, 5, 770–781. https://doi.org/10.1038/nrmicro1745
- NASA Astrobiology Institute. (2022). Life in extreme environments. Astrobiology at NASA. Retrieved from https://astrobiology.nasa.gov/research/life-in-extreme-environments/
- Tyler, P.A. (Ed.). (2003). Ecosystems of the Deep Oceans. Elsevier.
- Orcutt, B.N., Sylvan, J.B., Knab, N.J., & Edwards, K.J. (2011). Microbial ecology of the dark ocean. Microbiol. Mol. Biol. Rev., 75, 361–422.
- Snelgrove, P.V.R. (1999). Getting to the bottom of marine biodiversity. BioScience, 49(2), 129–138.
- German, C.R., & Seyfried, W.E. (2014). Hydrothermal processes. In Treatise on Geochemistry (2nd ed.). Elsevier.
- Russell, M.J., & Martin, W. (2014). The alkaline hydrothermal vent hypothesis. Phil. Trans. R. Soc. B.
- Wächtershäuser, G. (1990). Evolution of metabolic pathways. PNAS, 87(1), 200–204.
- Helly, J.J., & Levin, L.A. (2004). Global distribution of naturally occurring marine hypoxia on continental margins. Deep-Sea Research Part I, 51(9), 1159–1168.
Silvio Rossignoli
Coordinatore Scientifico ed Esperto Economia del Mare, Underwater,Space&Blue

 Economia delle Isole - Island Economy
 Dimensione Subacquea- Underwater Economy
 Space&Blue Magazine
 Economia del Mare - Un Governo del Mare
 Le Zone Economiche Esclusive(ZEE) italiane al servizio della Blue Economy- Roma
 3° Forum Space&Blue 2025
 Piano del Mare
 Esperti dell'Economia del Mare
 Economia del Mare nel Mondo
 Blue Forum Italia Network